Instrucciones
Usted tiene las siguientes opciones en este simulador para moléculas pequeñas tanto inorgánicas como orgánicas.
- En la parte superior, aparecen los botones 2D y 3D para que pueda observar el modelo en dos o tres dimensiones.
- A continuación se presenta el modelo en dos o tres dimensiones.
- "Search" puede ser utilizado para buscar alguna molécula, escribiendo el nombre en inglés, por ejemplo al escribir, sulphuric acid (ácido sulfúrico).
- Color de fondo, sirve seleccionar el color del fondo del modelo en tres dimensiones.
- Acercar +, acerca el modelo.
- Acercar -, aleja el modelo.
- Girar X, Y, Z, para girar el modelo en tres dimensiones en los ejes x, y, z.
- Alambres, varillas y pelotas y varillas, para cambiar el modelo en tres dimensiones en esas representaciones.
- Energía, aparce en la parte superior la energía de la molécula en kJ/mol o kcal/mol.
- Minmizar por MMFF94, normalmente las estructuras iniciales que se crean en los simuladores poseen energías mucho mayores a las que tendría un objeto real, por esta razón, se utilizan algoritmos para calcular las posiciones y fuerzas originales, con el objetivo de minimizarlas y que sean más realistas.
- Arrastrar Minimizar, usted puede arrastrar un átomo, soltarlo y entonces el sistema hace un cálculo de minimización de energía.
- Simetría, muestra los planos de simetría en la molécula.
- Editar, puede editar la molécula agragando o quitando átomos y enlaces.
- Superficie VDW, la superficie de van der Waals de una molécula es una representación abstracta o modelo de esa molécula, que ilustra dónde, en términos muy generales, podría haber una superficie para la molécula en función de los cortes duros de los radios de van der Waals para átomos individuales, y representa una superficie a través de la cual la molécula podría concebirse interactuando con otras moléculas.
- PEM es el mapa de potencial electrostático.
- Carga parcial calcula la carga parcial de cada átomo.
- Tetraedros, para el caso que exista alguna átomo tetraédrico.
- Dipolos enlaces, para ver el los dipolos de todos los enlaces.
- Dipolo molecular, para ver el momento dipolar resultante de toda la molécula.
- Hibridación sp, sp2 y sp3, para ver la hibridacion del átomo de carbono.
- Anillo aromático, muestra los anillos aromáticos.
- Heteroátomo, muestra los heteroátomos en heterociclos.
- C quiral (nomenclatura R/S) y E/Z para isomería geométrica en alquenos, los descriptores R/S permiten indicar en un compuesto orgánico la configuración (la disposición espacial de los sustituyentes) de un carbono o centro quiral, estereocentro o centro estereogénico, que es el caso de un átomo de carbono con cuatro sustituyentes diferentes. Se añade R o S entre paréntesis como prefijo delante del nombre de la molécula orgánica. En caso de ser más de uno el centro estereogénico, separados por coma se indica el descriptor R o S de cada uno, precedido del número o localizador que identifica su posición.
- Invertir R/S, para cambiar la quiralidad.
- Nomenclatura E/Z en Alquenos, el sistema tradicional para nombrar los isómeros geométricos de un alqueno, en el que los mismos grupos están dispuestos de manera diferente, es nombrarlos como cis o trans. Sin embargo, es fácil encontrar ejemplos donde el sistema cis-trans no se aplica fácilmente.
- N electrones, O electrones y S electrones, para ver los electrones libres del nitrógeno, oxígeno y azufre.
- C primario, C secundario, C terciario, C cuaternario, identifica la clasificación de los átomos de carbono.
- Dadores y aceptores de puentes de hidrógeno, señala los átomos que pueden dar o aceptar puentes de hidrógeno
- Botón 2D, cuando escoge el botón 2D, la aplicación tiene su propio menú y quedan inhabilitados todos los botones 3D.

Laboratorio de IA: Tu Copiloto de Estudio
Aprende a usar la Inteligencia Artificial Científica
La IA no sirve solo para dar respuestas, sino para profundizar el pensamiento crítico e interactivo. Aquí tienes "Prompts" estructurados para desafiar tu comprensión sobre la Química Bioortogonal, la Inmunooncología de Carolyn Bertozzi, los modelos estructurales de AlphaFold y las nuevas terapias dirigidas:
1. La Analogía de la Metrópolis y Bioortogonalidad
Concepto de ortogonalidad química en seres vivos.
2. El Escudo de Azúcar y el Freno Siglec
Puntos de control inmune mediados por ácido siálico.
3. Tensión Angular vs Toxicidad del Cobre
Mecanismo SPAAC vs CuAAC y reactivos DBCO/BCN.
4. Plataforma Click-to-Release (CAPAC)
Activación local de quimioterapia sin cardiotoxicidad.
5. Podadoras T-Sia: Hemólisis y Trombocitopenia
Toxicidad sistémica vs direccionamiento por anticuerpos.
6. IA Estructural: AlphaFold vs Cristales PDB
Modelado computacional de receptores Siglec-9 y Siglec-7.
Copia cualquier prompt y pégalo directamente en tu herramienta de IA favorita:
Delegación Docente del Departamento de Química en el ACS Fall 2026
Participación de profesores de la Universidad de San Carlos de Guatemala (Facultad de Ciencias Médicas y EFPEM) en la reunión de la Sociedad Americana de Química (Chicago, Illinois), asistencia a conferencias de Premios Nobel y presentación de póster de investigación.
Satisfacción Institucional y Participación Académica Internacional
Para nosotros, los profesores de la Universidad de San Carlos de Guatemala —la Licenciada Luisa Fernanda Rosales Hernández, el Licenciado José León Castillo Arroyave, la Licenciada María Leticia Salguero Orellana (del Departamento de Química de la Facultad de Ciencias Médicas) y el Licenciado Raúl Hernández Mazariegos (también catedrático en la Escuela de Formación de Profesores de Nivel Medio -EFPEM, siempre de la Universidad de San Carlos de Guatemala)—, siendo los cuatro miembros de la Sociedad Americana de Química (American Chemical Society - ACS), constituye una profunda alegría y satisfacción haber asistido y participado activamente en el prestigioso evento ACS Fall 2026, celebrado en la ciudad de Chicago, Illinois.
El evento contó con la destacada participación de cuatro Premios Nobel, a cuyas conferencias magistrales y simposio tuvimos la satisfacción de asistir: la laureada Dra. Carolyn R. Bertozzi (Premio Nobel de Química 2022 por la concepción de la Química Bioortogonal y sus aplicaciones biomédicas) y el laureado Dr. M. Stanley Whittingham (Premio Nobel de Química 2019 por el desarrollo pionero de las baterías de iones de litio), además de las ponencias de Stefan Hell (Premio Nobel de Química 2014) y Jack W. Szostak (Premio Nobel de Medicina 2009).
Asimismo, en la presentación de pósters del evento oficial (modalidad Poster Presentation, asignado al Poster Board #1733), el Licenciado José León Castillo Arroyave presentó el trabajo de investigación:
Compartimos esta satisfacción con toda la comunidad de la Facultad de Ciencias Médicas, la Escuela de Formación de Profesores de Nivel Medio (EFPEM) y la Universidad de San Carlos de Guatemala. Esta experiencia enriquece directamente nuestra labor docente y los recursos educativos de GuateQuímica, acercando a nuestros estudiantes y profesorado a los desarrollos contemporáneos de la química.
Registro Fotográfico Oficial de la Delegación
Haga clic sobre cualquier fotografía para abrir el visor interactivo en alta resolución.
Encuentro con la Dra. Carolyn R. Bertozzi
Histórico momento tras la conferencia magistral sobre Química Bioortogonal aplicada a la Inmunooncología en el Simposio de la ACS en Chicago.
- Licda. Luisa Fernanda Rosales Hernández (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Dra. Carolyn Bertozzi (Laureada Premio Nobel)
- Lic. José León Castillo Arroyave (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Licda. María Leticia Salguero Orellana (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Lic. Raúl Hernández Mazariegos (Facultad de Ciencias Médicas y EFPEM - USAC; Miembro ACS)
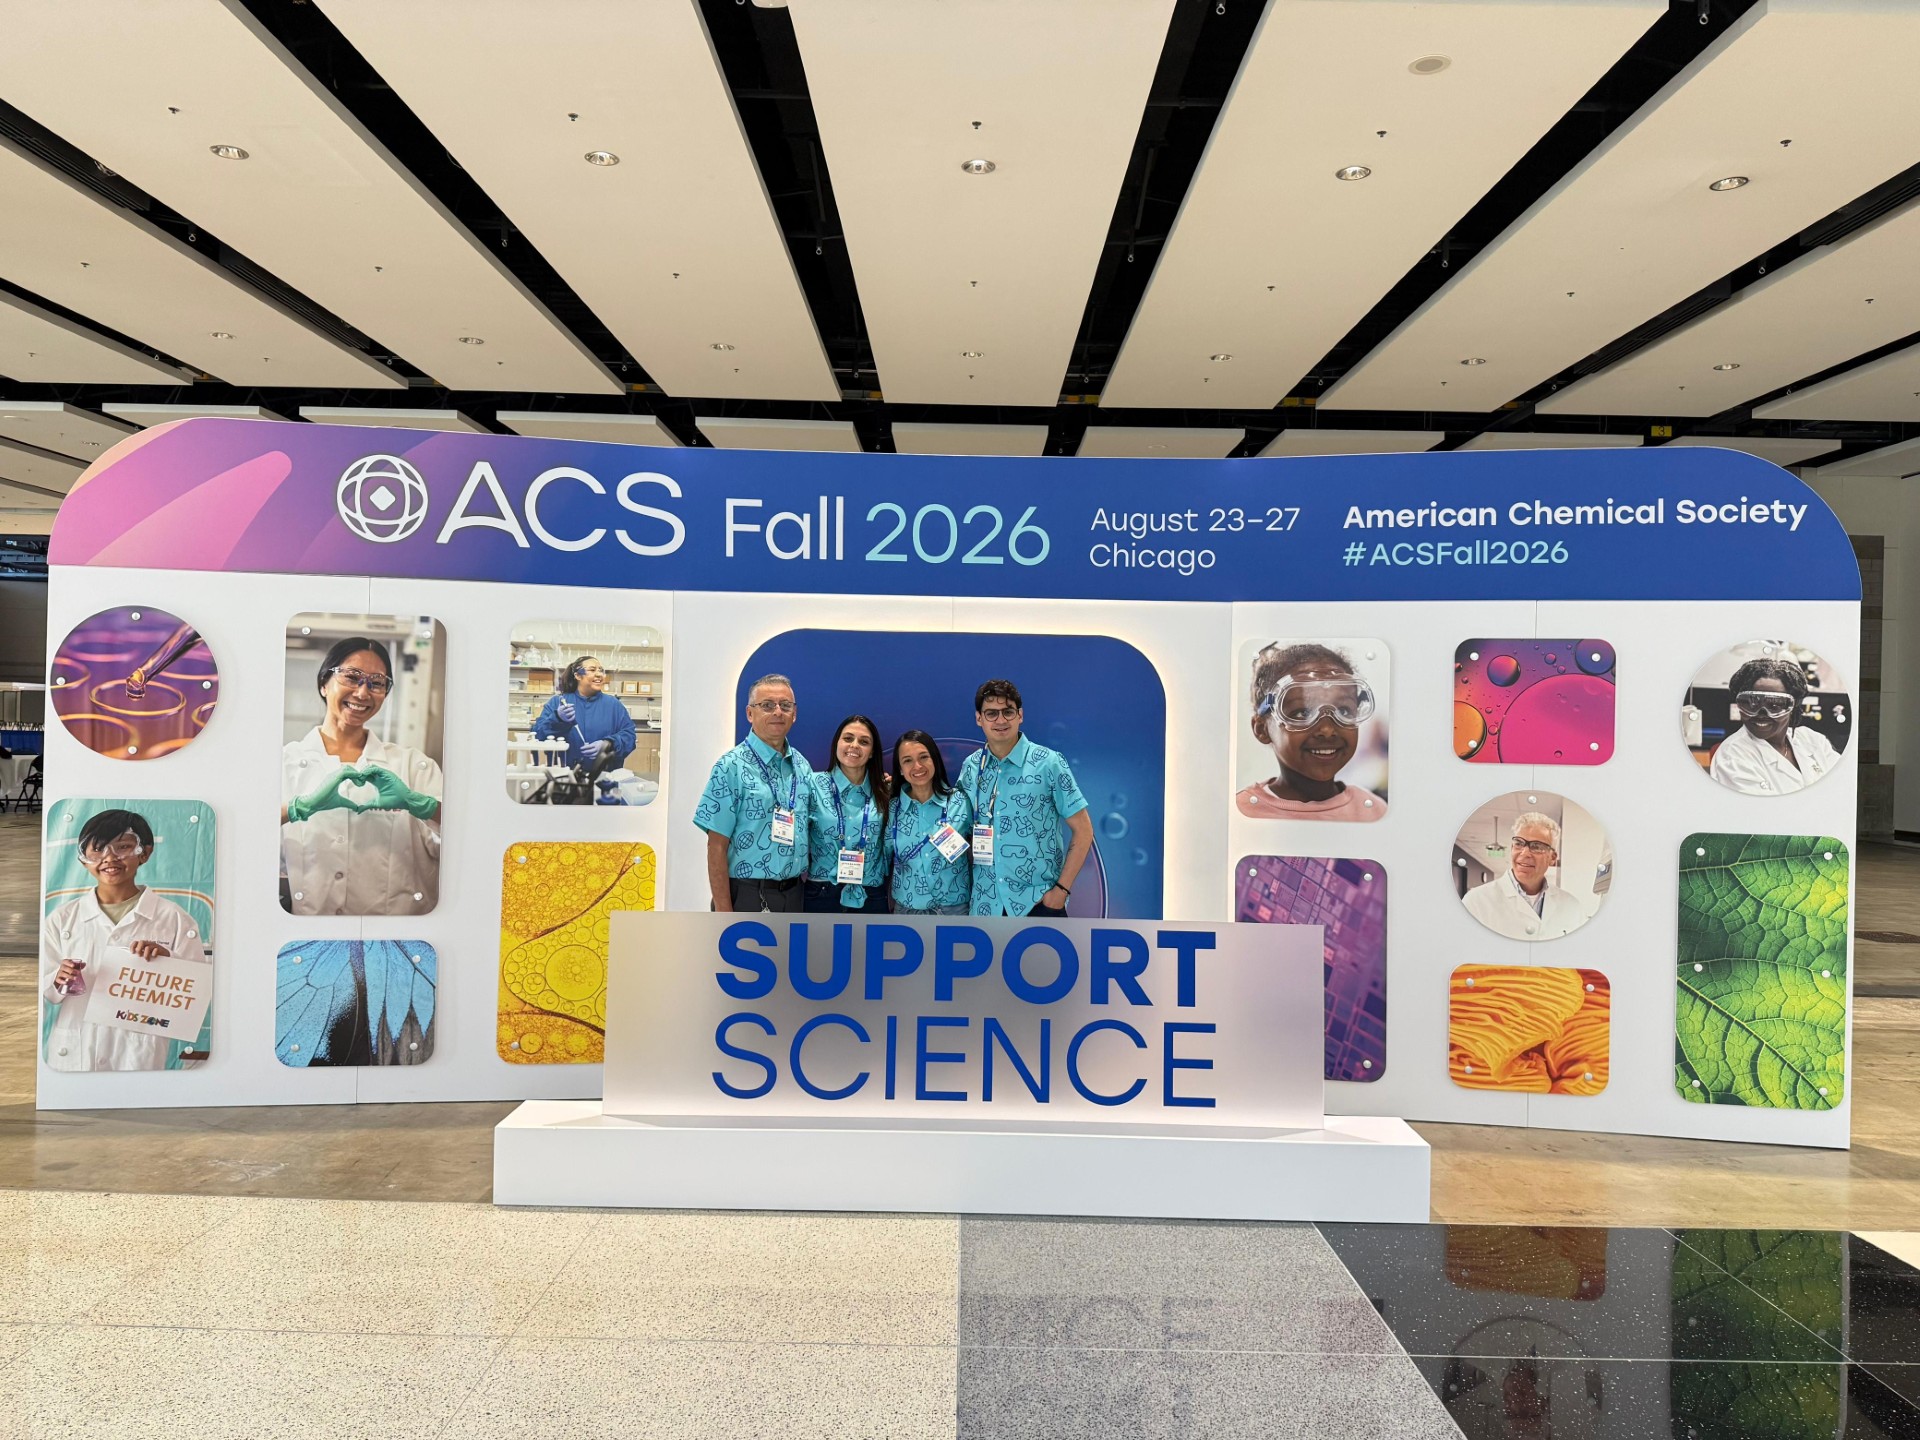
La Delegación Completa en el ACS Fall 2026
Los cuatro miembros de la Sociedad Americana de Química portando la indumentaria oficial conmemorativa de la ACS frente al stand interactivo institucional «Support Science».
- Lic. Raúl Hernández Mazariegos (Facultad de Ciencias Médicas y EFPEM - USAC; Miembro ACS)
- Licda. María Leticia Salguero Orellana (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Licda. Luisa Fernanda Rosales Hernández (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Lic. José León Castillo Arroyave (Facultad de Ciencias Médicas - USAC; Miembro ACS)
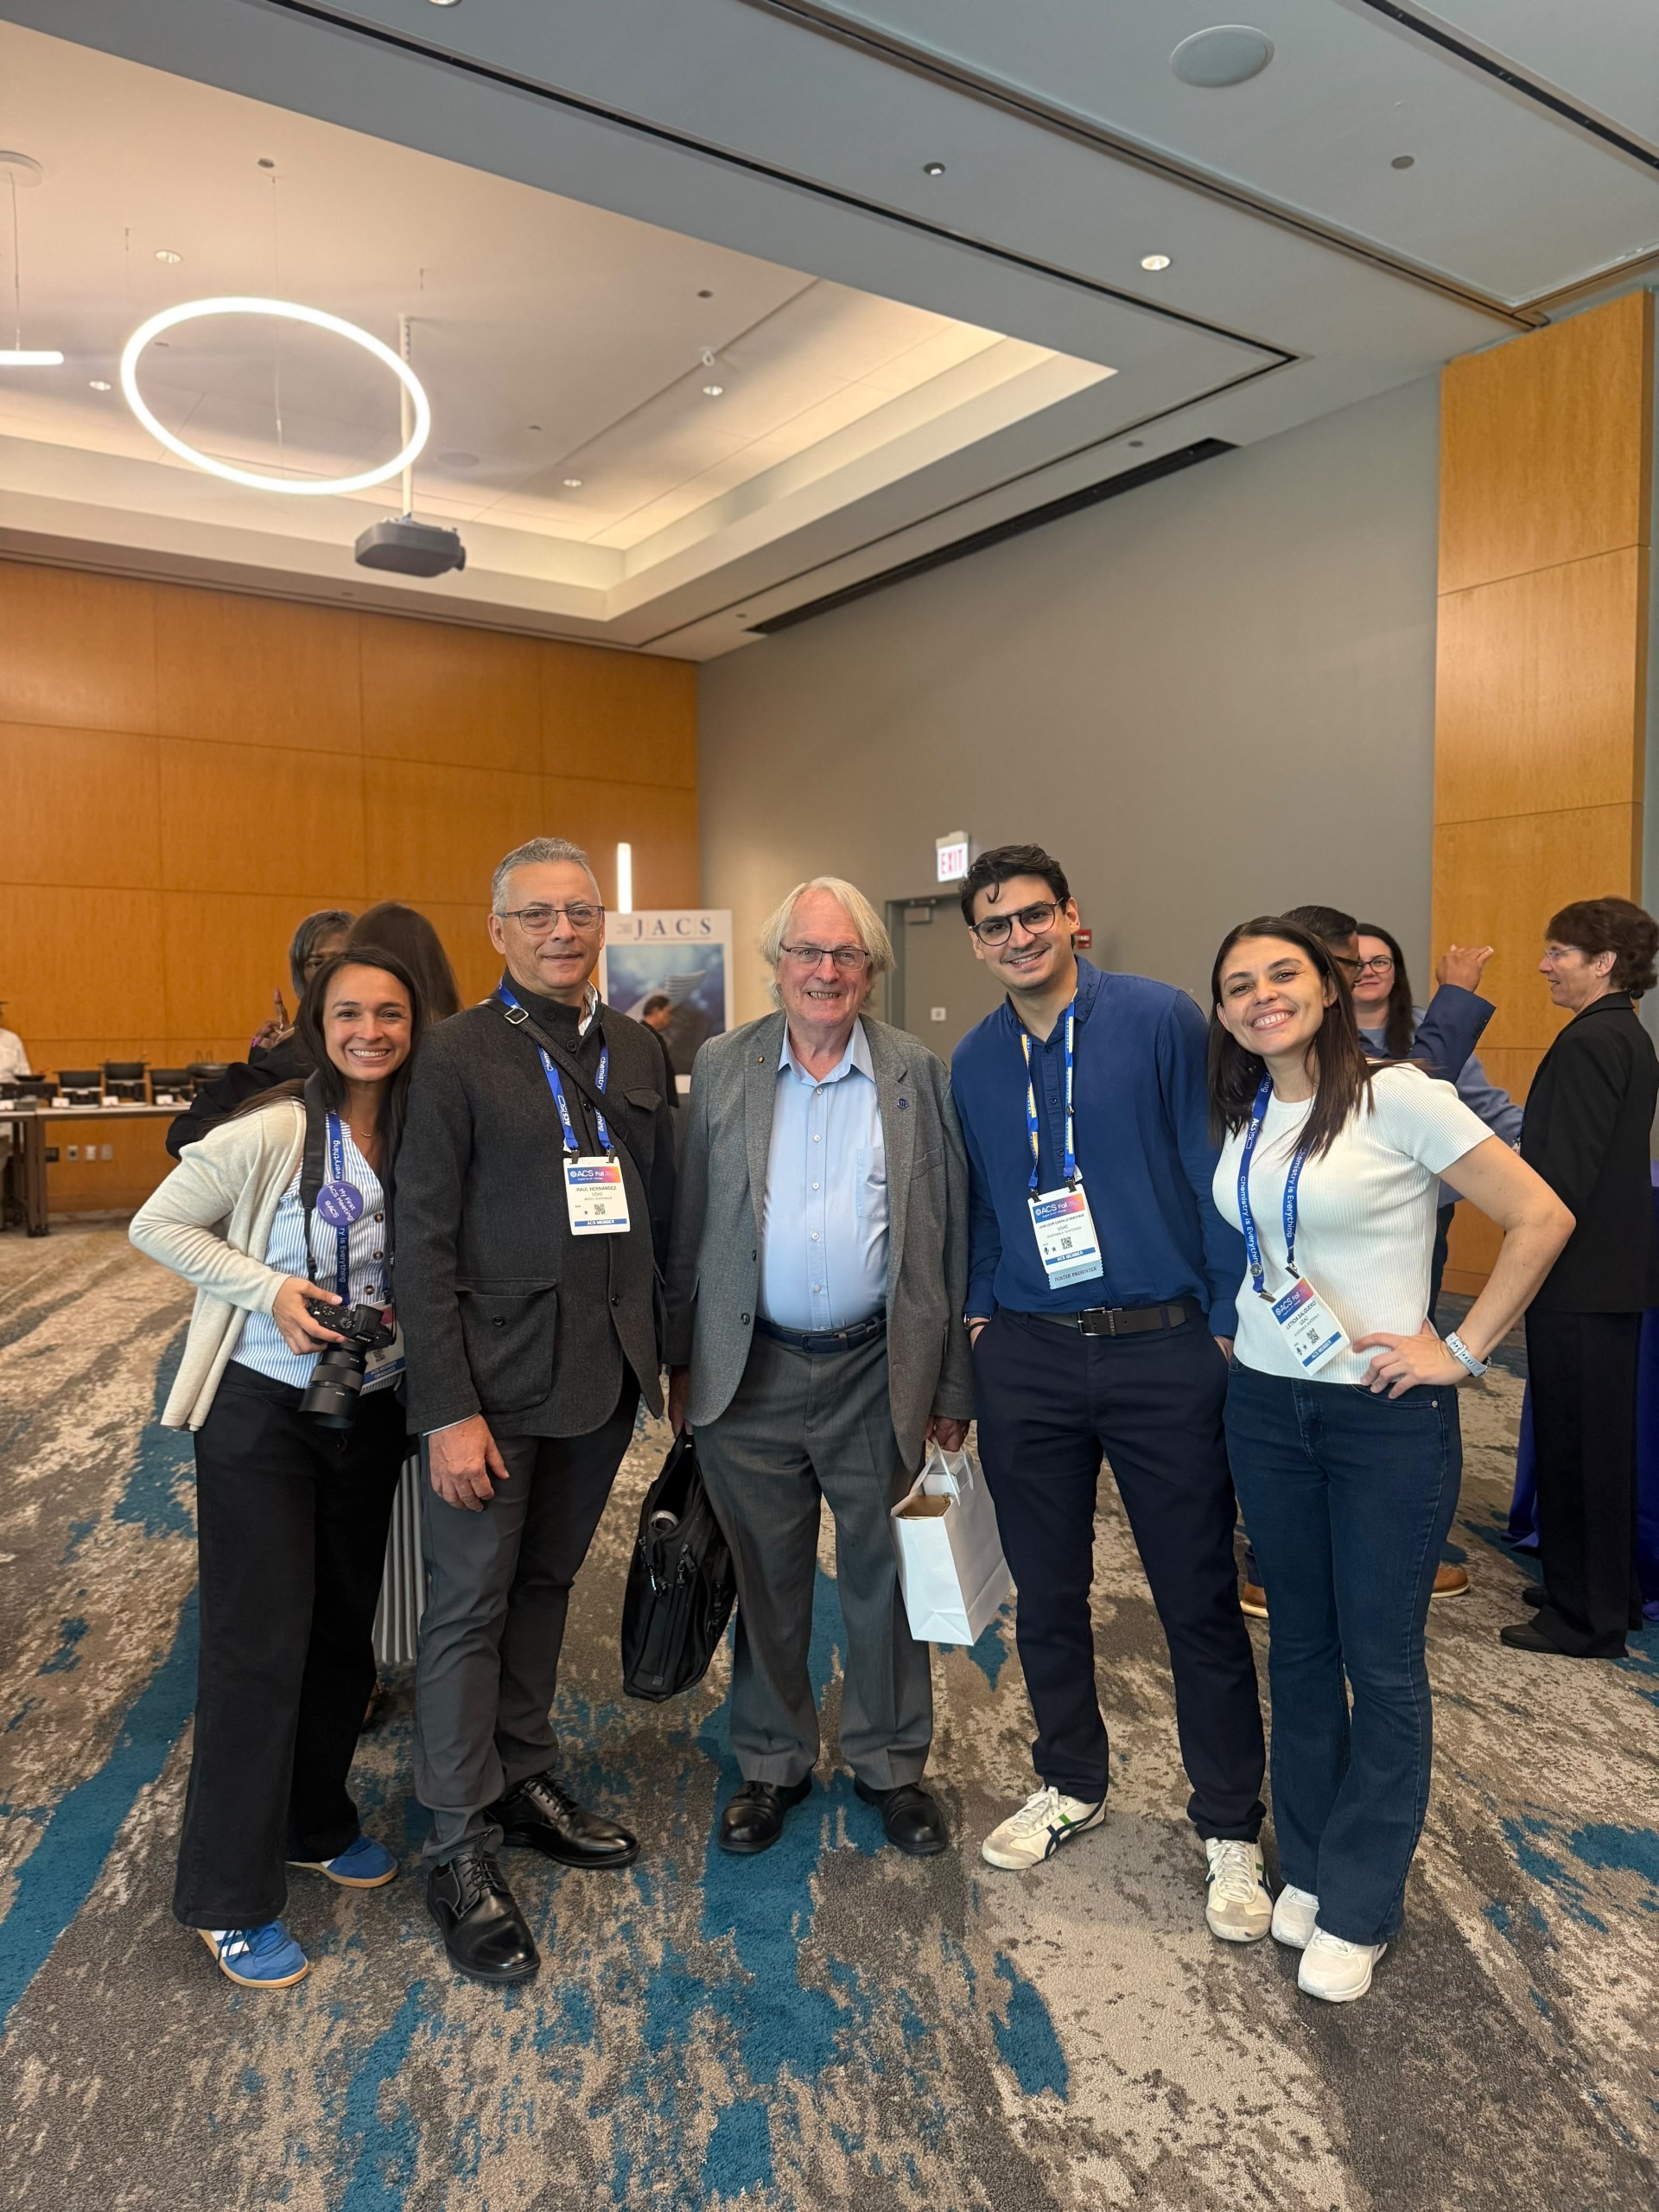
Encuentro con el Dr. M. Stanley Whittingham
Fotografía conmemorativa tras su conferencia magistral con el creador y padre pionero de las baterías de iones de litio, pilar fundamental de la revolución de energía limpia y tecnologías móviles en el mundo.
- Licda. Luisa Fernanda Rosales Hernández (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Lic. Raúl Hernández Mazariegos (Facultad de Ciencias Médicas y EFPEM - USAC; Miembro ACS)
- Dr. M. Stanley Whittingham (Laureado Premio Nobel)
- Lic. José León Castillo Arroyave (Facultad de Ciencias Médicas - USAC; Miembro ACS)
- Licda. María Leticia Salguero Orellana (Facultad de Ciencias Médicas - USAC; Miembro ACS)

Presentación del Póster: Síntesis de β-Enaminonas
Presentación del trabajo de investigación en síntesis mecanoquímica sostenible en la presentación de pósters del evento (Poster Board #1733).
Lic. José León Castillo Arroyave es docente e investigador de la Facultad de Ciencias Médicas (USAC) y miembro de la Sociedad Americana de Química (ACS), al igual que sus tres colegas de delegación.
Aclaración del Autor
Antes de iniciar la exploración en el Simulador 3D JSmol, deseo aclarar que desarrollé este trabajo con el ánimo de compartir lo presentado por la laureada Dra. Carolyn Bertozzi en su conferencia magistral durante el evento ACS Fall 2026, poniendo a disposición de los estudiantes y la comunidad educativa un recurso interactivo y visual para facilitar la comprensión tridimensional de los mecanismos de la Química Bioortogonal.
Ruta Didáctica: De la Probeta al Punto de Control Inmune
Para comprender los artículos y conferencias de la Dra. Carolyn Bertozzi sin perderse en la complejidad molecular, explora esta síntesis visual: 3 metáforas clave, la línea de tiempo evolutiva de cómo la química resolvió cada problema biológico, y preguntas de razonamiento para autoevaluación.
1. Tres Metáforas Visuales (Tu Anclaje Conceptual)
Fija estas tres imágenes mentales antes de profundizar en las ecuaciones y estructuras cristalográficas:
2. Línea de Tiempo Evolutiva: De Problemas a Soluciones Químicas
Observa cómo cada hito de Carolyn Bertozzi surgió al responder un problema experimental concreto:
La Ligación de Staudinger Modificada y la Bioortogonalidad
Química Click Libre de Cobre (SPAAC en Ciclooctinos Tensados)
El Eje Glicoinmune: Siglec-7 y Siglec-9 como Puntos de Control
Conjugados Anticuerpo-Sialidasa: El Cortacésped de Superficie
Quimeras LYTAC y Consagración con el Premio Nobel 2022
Conferencia Magistral en Chicago y Traducción Clínica
3. Preguntas de Razonamiento Químico (Auto-evaluación para el Estudiante)
Pon a prueba tu pensamiento crítico. Intenta formular tu hipótesis y haz clic en cada pregunta para desplegar el fundamento químico detallado:
Pregunta 1: ¿Por qué la reacción CuAAC de Sharpless requería Cobre, y cómo logró Bertozzi que fuera espontánea usando sólo geometría molecular?
Ver FundamentoFundamento Termodinámico y Cinético:
En un alquino lineal normal (ej. propargilo), el ángulo de enlace del carbono con hibridación sp es exactamente de 180°. La barrera de activación dipolar (ΔG‡) para cicloadicionar con una azida a temperatura ambiente es muy alta, por lo que Sharpless y Meldal usaron Cu(I) para coordinar el alquino y formar un intermediario acetiluro de cobre que reduce drásticamente esa barrera.
Bertozzi recurrió a la tensión de anillo de Baeyer: al forzar el triple enlace dentro de un anillo de 8 carbonos (ciclooctino), los carbonos sp quedan forzados a un ángulo anormal de ~158°. Esta deformación almacena aproximadamente 18 kcal/mol de energía de tensión. Al acercarse la azida, la reacción relaja esa tensión geométrica transformando el enlace en un cicloocteno más flexible, liberando la energía almacenada para superar la barrera cinética espontáneamente a 37 °C sin necesidad de metales tóxicos.
Pregunta 2: Al explorar el receptor en el simulador 3D, ¿por qué la interacción con la Arginina (Arg124 en Siglec-7 o Arg120 en Siglec-9) es químicamente indispensable?
Ver FundamentoFundamento de Enlace Intermolecular y Estructura Cristalina:
El grupo guanidinio de la cadena lateral de la Arginina posee un pKa ≈ 12.5, por lo que a pH fisiológico (7.4) se encuentra 100% ionizado con carga neta positiva (+1) deslocalizada por resonancia. A su vez, el ácido siálico (ácido N-acetilneuramínico, Neu5Ac) tiene un grupo carboxilato con pKa ≈ 2.6, encontrándose completamente desprotonado con carga neta negativa (-1).
Ambos residuos establecen un puente salino canónico (atracción culómbica ion-ion) estabilizado tridimensionalmente por una red de enlaces de hidrógeno con aminoácidos vecinos (como Trp, Lys y Ser). Si esta Arginina muta o se bloquea competitivamente, la energía libre de unión (ΔG°) colapsa, el receptor Siglec no puede retener al ligando y se interrumpe la cascada de fosforilación inhibidora ITIM, permitiendo que la célula inmune ataque al tumor.
Pregunta 3: ¿Por qué un conjugado anticuerpo-sialidasa es conceptualmente superior a un quimioterápico citotóxico tradicional?
Ver FundamentoFundamento Farmacológico e Inmunoterapéutico:
Los quimioterápicos convencionales (como cisplatino, doxorrubicina o paclitaxel) son venenos celulares estequiométricos: bloquean la replicación del ADN o el huso mitótico, afectando indiscriminadamente a cualquier célula del cuerpo que se divida rápidamente (médula ósea, epitelio digestivo, folículos pilosos), lo que genera una estrecha ventana terapéutica y severos efectos adversos.
En contraste, el conjugado anticuerpo-sialidasa es una herramienta catalítica dirigida de reprogramación microambiental: una sola molécula de enzima ligada al tumor puede hidrolizar cientos de residuos de ácido siálico por minuto sin alterar la viabilidad de las células sanas vecinas. No busca envenenar a la célula diana, sino retirar su "escudo de invisibilidad", permitiendo que las propias células citotóxicas Natural Killer y macrófagos del paciente se reactiven y ejecuten una eliminación tumoral natural y altamente selectiva.
Módulo 1: Fundamentos de la Química Bioortogonal
Mecanismos & CinéticaTradicionalmente, la síntesis orgánica requiere disolventes anhidros, atmósferas inertes de argón o nitrógeno, catalizadores metálicos agresivos y temperaturas elevadas. Sin embargo, en el año 2000, la Dra. Carolyn R. Bertozzi acuñó el término química bioortogonal para describir transformaciones químicas capaces de llevarse a cabo dentro de un organismo vivo con fidelidad absoluta.
La Analogía de la Metrópolis Celular
Imagina la célula viva como una metrópolis congestionada en plena hora punta (Nueva York o Tokio), con más de 37 millones de habitantes (moléculas de agua al 70%, iones, aminoácidos, proteínas y nucleófilos como tioles y aminas). Realizar una reacción química común allí sería como soltar una bomba en medio del tráfico. En cambio, dos reactivos bioortogonales son como dos agentes secretos con una contraseña cifrada exclusiva: se cruzan en medio de millones de personas, se dan la mano e intercambian un maletín (reacción covalente ultraselectiva) sin tropezar ni interferir con ningún ciudadano.
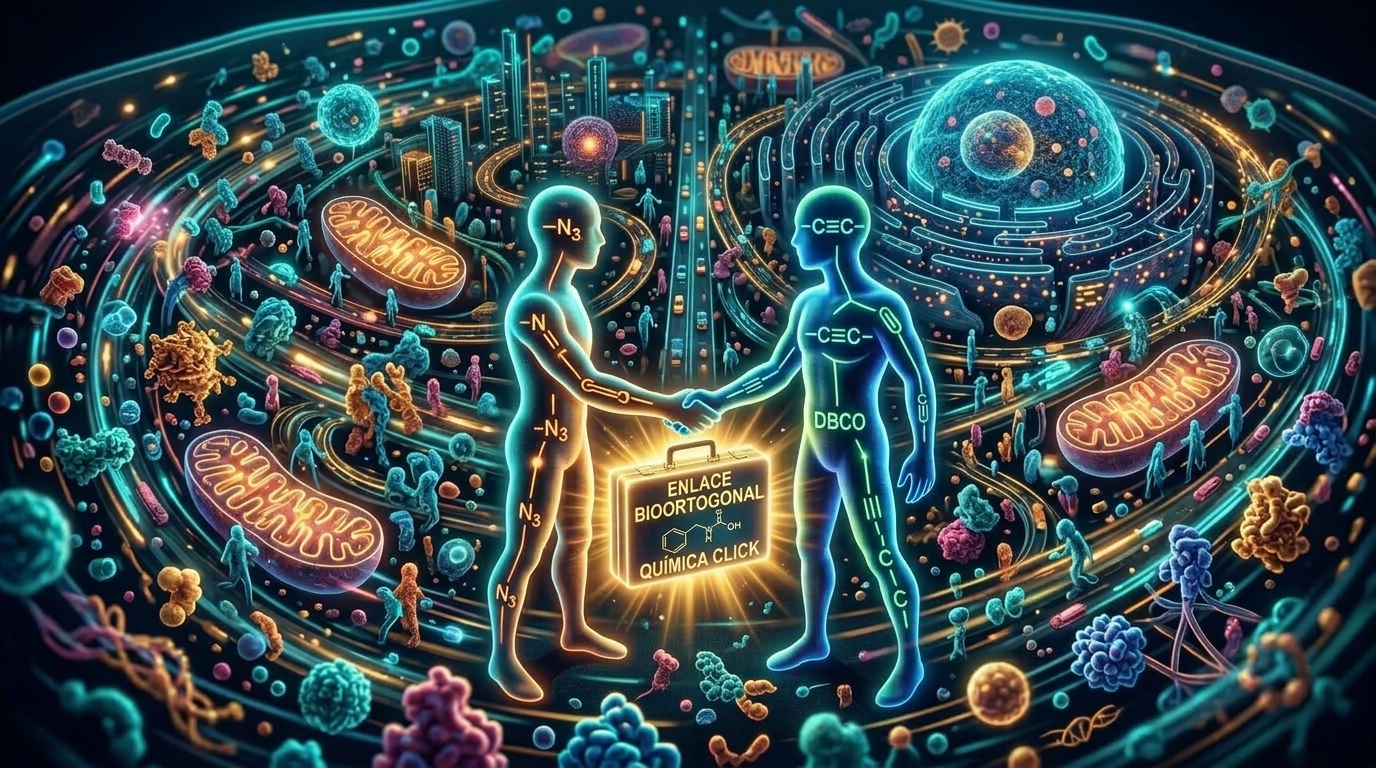
Analogía visual: Dos reactivos bioortogonales interactuando selectivamente en medio de la densa multitud molecular de la célula viva.
Hacer realidad esta "misión secreta" en un organismo vivo representó un desafío colosal para la química sintética. Para que dos socios reactivos funcionen con verdadera bioortogonalidad deben satisfacer tres condiciones indispensables: inocuidad absoluta (sin interferir con el metabolismo ni resultar citotóxicos), estabilidad termodinámica frente al agua y a los reactivos biológicos endógenos, y una elevada constante cinética de segundo orden (k2).
¿Por qué es tan decisivo el valor de k2? Al ser una reacción bimolecular (encuentro de dos reactivos independientes: sonda + molécula diana), la velocidad depende del producto de ambas concentraciones (v = k2[A][B]). En una célula o tejido no se pueden añadir grandes cantidades de reactivo sin causar toxicidad; las moléculas se encuentran extraordinariamente diluidas (a niveles micromolares o nanomolares). Si el valor de k2 es bajo, la reacción tardaría horas o días, dando tiempo a que la célula degrade o elimine los reactivos. Solo con un k2 lo bastante elevado la unión química puede completarse en minutos o segundos en tiempo real.
Esta necesidad crítica de maximizar k2 sin comprometer la biocompatibilidad impulsó una fascinante carrera de diseño molecular a lo largo de más de dos décadas. A continuación, se presenta la evolución cronológica de estas plataformas, desde los pioneros reactivos de fósforo hasta la liberación de tensión de anillo que consagró el Premio Nobel 2022:
¿Cuál era el Fin Último de esta Evolución?
El fin último de las plataformas bioortogonales no fue simplemente desarrollar reacciones sintéticas elegantes en el matraz, sino trasladar la capacidad de ensamblaje molecular al interior de organismos vivos intactos [11] para resolver tres desafíos biomédicos sin precedentes:
A diferencia del ADN o las proteínas (marcables genéticamente con GFP, Proteína Verde Fluorescente), los glicanos del glucocáliz (la cubierta de azúcares en la superficie celular) no tienen código genético directo. El primer objetivo fue crear una "etiqueta química sintética" para visualizarlos y rastrearlos en células vivas sin destruirlas.
La transición Staudinger → CuAAC → SPAAC → iEDDA obedeció a una meta estricta: lograr que moléculas ultradiluidas (a escala nanomolar en sangre) reaccionaran en segundos antes de ser eliminadas, eliminando por completo los catalizadores de cobre citotóxicos.
Evolución de las Plataformas Bioortogonales:
Desarrollada por Carolyn Bertozzi en 2000 [1]. Utiliza una triarilfosfina modificada con un éster electrofílico que atrapa intramolecularmente el aza-iluro intermediario, formando un enlace amida nativo sin metales pesados.
- Ataque inicial: El fósforo nucleofílico de la fosfina ataca a la azida celular (R−N₃, incorporada previamente en el glucocáliz al alimentar a la célula con un azúcar sintético señuelo) formando una fosfazida.
- Formación del aza-iluro: Se libera gas nitrógeno (N₂ ↑) y se genera el intermediario aza-iluro (P+−N−).
- Trampa intramolecular: El aza-iluro ataca al éster vecino (−COOCH₃) antes de que el agua celular pueda destruirlo.
- Unión amida final: Se libera metanol y se consolida un enlace amida covalente permanente entre la sonda y la célula.
En la estructura de Lewis canónica de la azida (Nterm≡N+−N−−R), el nitrógeno central soporta una carga positiva formal fija (+1). Cuando el par libre del fósforo (un nucleófilo blando y polarizable) se aproxima al nitrógeno terminal, los electrones π son atraídos hacia el N+ central, el cual actúa como un "sumidero de electrones" interno. Esto deslocaliza la densidad electrónica, crea electrofilia inducida en el nitrógeno extremo y conduce a la formación del enlace P−N con expulsión irreversible de gas nitrógeno (N₂ ↑).

Premio Nobel de Química 2022 (ganado conjuntamente por Carolyn Bertozzi, Barry Sharpless y Morten Meldal) [6]. La reacción "clic" fundacional es la CuAAC (Copper-Catalyzed Azide-Alkyne Cycloaddition o Cicloadición Azida-Alquino catalizada por Cobre, variante de la reacción 1,3-dipolar de Rolf Huisgen desarrollada independientemente por K. Barry Sharpless y Morten Meldal). Aunque la CuAAC une azidas y alquinos terminales con altísimo rendimiento, requiere catalizador de cobre (Cu⁺), altamente citotóxico porque genera especies reactivas de oxígeno (ROS) mortales en células vivas. Carolyn Bertozzi resolvió este obstáculo radicalmente al crear la SPAAC (Strain-Promoted Azide-Alkyne Cycloaddition), eliminando por completo el cobre mediante tensión angular de anillo prealmacenada en ciclooctinos.
- Complejo dinuclear de cobre: Dos iones Cu⁺ coordinan cooperativamente el alquino terminal [7]: uno forma un enlace σ-acetiluro y el segundo asiste mediante coordinación π.
- Metalaciclo de 6 miembros: Entra la azida orgánica (R'−N₃) aportando sus 3 átomos de nitrógeno, los cuales coordinan con el Cu y el alquino formando un ciclo intermedio de 6 miembros (cupratriazol) con 100% de regioselectividad 1,4.
- Contracción y citotoxicidad: La eliminación reductora libera el 1,2,3-triazol regenerando Cu⁺; sin embargo, en células el Cu⁺ produce radicales hidroxilo (•OH) que matan la célula viva.

- Superación del CuAAC tóxico: Mientras que la CuAAC depende de Cu⁺ que induce muerte celular por estrés oxidativo (ROS), la SPAAC sustituye toda catálisis metálica por energía química intrínseca biocompatible.
- Deformación angular (~18 kcal/mol): Al forzar un triple enlace lineal (180°) dentro de un anillo de 8 carbonos (DBCO/BCN), los enlaces se flexionan a ~163°, almacenando una colosal tensión que abate la barrera de activación (ΔG‡).
- Cicloadición [3+2] concertada: La azida celular y el alquino tenso reorganizan 6 electrones π en un solo paso libre de subproductos, formando un anillo de 1,2,3-triazol aromático fusionado biológicamente indestructible.

Diels-Alder con demanda electrónica inversa. La reacción más rápida conocida en química médica. Ocurre en cuestión de segundos en concentraciones micromolares dentro de seres vivos, liberando únicamente gas nitrógeno inerte como subproducto.
El Gran Punto Ciego: Proteínas (marcables con GFP) vs. Glicanos del Glucocáliz
Genética vs. Síntesis MetabólicaA finales de los años 90, la biología celular experimentó una revolución gracias a la Proteína Verde Fluorescente (GFP) (Premio Nobel 2008): cualquier proteína celular podía rastrearse en vivo editando el ADN para generar una proteína de fusión con su propia "linterna verde". Sin embargo, el glucocáliz (la densa capa de carbohidratos que recubre toda célula viva) era completamente inaccesible a esta técnica:
1. ¿Por qué funcionaba tan bien con las proteínas?
Las proteínas se fabrican siguiendo las instrucciones directas del ADN (los genes).
Los científicos editaron el gen de cualquier proteína para agregarle el gen de la
GFP (una proteína de medusa que brilla en verde). Cada vez que la célula fabricaba
esa proteína, salía de la fábrica celular con su propia linterna verde pegada y podían
apagar la luz del microscopio para ver en vivo cómo se movía.
2. ¿Por qué era imposible hacer lo mismo con los azúcares (Glicanos)?
El exterior de la célula está cubierto por un espeso "bosque" de carbohidratos llamado
glucocáliz (donde se reconocen las células, se pegan los virus y el cáncer se
camufla). Se quería ponerles una linterna para verlos, pero chocaron contra dos muros insuperables:
- No existe un "gen del azúcar": Las proteínas tienen código genético en el ADN, pero los azúcares no están en el ADN. Se sintetizan artesanalmente en el aparato de Golgi por enzimas obreras que unen piezas una por una. No había ningún gen donde insertar la linterna GFP.
- El tamaño relativo (un piano sobre una hormiga): La linterna GFP es una proteína gigante (pesa ~27.000 Da), mientras que un azúcar de la célula (como el ácido siálico) es diminuto (pesa apenas ~309 Da). Pegarle una proteína de 27.000 Da a un azúcar de 309 Da equivaldría a atarle un piano de cola a una hormiga: la célula no podría procesarlo, las enzimas lo rechazarían y jamás llegaría a la membrana.
3. La genialidad de Carolyn Bertozzi (El motivo de su Premio Nobel):
Como la genética no podía, Bertozzi usó la química: en vez de una linterna gigante,
le puso al azúcar una etiqueta diminuta de solo 3 átomos de nitrógeno: el grupo azida
(−N₃), que pesa apenas 42 Da (como un granito de arena en la
hormiga). La célula consume este azúcar sin notar la diferencia y lo expone en su superficie. Luego,
desde afuera, se añade una sonda fluorescente que hace "clic" bioortogonal exclusivo con esa azida,
encendiendo el glucocáliz en células vivas por primera vez en la historia de la
ciencia.
Proteínas: Código Genético Directo
Siguen el dogma central (ADN → ARNm → Ribosoma). Existe una plantilla lineal donde insertar el gen de la GFP. El ribosoma traduce la proteína ya unida a la linterna verde de forma natural.
Marcaje genético directo in vivoGlicanos: Sin Código Genético (El Muro)
No hay "genes de azúcares". Se sintetizan por complejas cascadas de decenas de enzimas en el Golgi. Además, la GFP es un gigante de ~27.000 Da; pegarla a un monosacárido de ~309 Da destruiría su función y reconocimiento biológico.
Imposible de marcar por ingeniería genética| Parámetro | Proteínas Celulares | Glicanos del Glucocáliz |
|---|---|---|
| Origen biosintético | Traducción ribosómica directa desde plantilla de ARNm | Construcción enzimática multietapa en retículo y Golgi |
| ¿Posee gen propio? | Sí (secuencia de nucleótidos) | No (producto metabólico secundario) |
| Estrategia de marcaje | Fusión genética con GFP (~27 kDa) | Etiquetado metabólico + Química bioortogonal (Bertozzi) |
| Tamaño de la etiqueta | Macromolecular (238 aminoácidos, ~27.000 Da) | Atómica / Diminuta (Azida −N₃ ≈ 42 Da) |
| Estado celular al estudiar | Células vivas en tiempo real | Células vivas e intactas (gracias a SPAAC / iEDDA) |
Por naturaleza, ninguna célula humana o animal produce azidas (−N₃); es un grupo químico 100% artificial y ajeno a la biología. Para instalarlo en células vivas sin dañarlas, Carolyn Bertozzi inventó el Etiquetado Metabólico de Glicanos (un verdadero Caballo de Troya químico):
- 1. El azúcar camuflado: Se sintetiza un análogo de azúcar (como Ac₄ManNAz, azido-manosamina) que lleva un grupo azida diminuto en su estructura.
- 2. Asimilación celular: La célula se alimenta de este azúcar falso confundiéndolo con nutriente normal. Sus enzimas lo procesan por la ruta biosintética hasta convertirlo en ácido azido-siálico (SiaNAz).
- 3. Despliegue en membrana: El aparato de Golgi incorpora este ácido azido-siálico en los glicanos de superficie. En pocas horas, la membrana celular queda repleta de azidas expuestas hacia el exterior, listas para reaccionar con la fosfina de Bertozzi o el ciclooctino tenso.
En un alquino lineal normal, el ángulo de enlace C-C≡C es de 180°. Al forzarlo dentro de un anillo de 8 miembros (ciclooctino), los carbonos sp se deforman drásticamente a ~158°. Esta distorsión desestabiliza el estado basal y reduce sustancialmente la energía de activación (ΔG‡) necesaria para acoplarse con la azida, eliminando por completo la necesidad del catalizador de cobre.
Módulo 2: El Glucocáliz Tumoral y el "Escudo de Azúcar" del Cáncer
Glicobiología OncológicaDurante décadas, la oncología se centró casi exclusivamente en el ADN y las mutaciones de proteínas. Sin embargo, todas las células vivas están recubiertas por una densa y dinámica "selva" de carbohidratos llamada glucocáliz. La Dra. Carolyn Bertozzi demostró que las células cancerosas alteran radicalmente este bosque de azúcares para construir un escudo molecular que engaña al sistema inmunológico.
Hipersialilación: El Azúcar del Camuflaje
El ácido siálico (Neu5Ac) es un monosacárido cargado negativamente de 9 carbonos que corona los extremos de los glicanos de membrana. En los tumores malignos, las sialiltransferasas se hiperactivan, provocando una densa concentración de ácido siálico conocida como hipersialilación tumoral.
Este escudo sialilado crea una barrera física e hiperpolarizada que repele el contacto de las células inmunes y bloquea la penetración de citotóxicos.
Los Receptores Siglec: La Señal "No me comas"
Nuestras células inmunitarias innatas (macrófagos y células Natural Killer - NK) patrullan el cuerpo usando receptores de superficie llamados Siglec-7 y Siglec-9 (lectinas tipo I de unión a ácido siálico).
Cuando el ácido siálico del cáncer se acopla a los receptores Siglec, activa sus dominios intracelulares inhibidores (ITIM), enviando una señal potente de "no me comas" (don't eat me). El macrófago se paraliza y el tumor continúa creciendo sin ser atacado.
El Pasaporte Diplomático Falso del Tumor
Los puntos de control de proteínas (como PD-1/PD-L1) son muy conocidos en inmunoterapia. Carolyn Bertozzi descubrió que el eje Ácido Siálico - Siglec actúa como un punto de control glico-inmunológico paralelo: es el pasaporte diplomático falso que la célula cancerosa le muestra a los macrófagos para pasear frente a ellos con total impunidad.
Módulo 3: Estrategias Terapéuticas de Vanguardia
Traducción ClínicaComprender el escudo de ácido siálico y la reactividad bioortogonal abrió la puerta a una nueva generación de bioterapéuticos desarrollados por Carolyn Bertozzi y colaboradores:
1. La "Podadora Molecular" (Anticuerpo-Sialidasa)
¿Cómo quitarle el escudo al cáncer? Se une covalentemente un anticuerpo tumoral (ej. Trastuzumab anti-HER2) con una enzima sialidasa bacteriana modificada genéticamente.
El anticuerpo actúa como dron teledirigido llevando la enzima directo al tumor, donde "poda" el ácido siálico de la superficie tumoral sin afectar los tejidos sanos. Sin su escudo, los macrófagos devoran la célula cancerosa.
2. Quimeras Ab-Lec & LYTACs
Degradadores extracelulares dirigidos. Las moléculas quiméricas Ab-Lec fusionan un anticuerpo con lectinas diseñadas para secuestrar glicoproteínas patogénicas.
A través del receptor CI-M6PR, arrastran estas dianas hacia el interior de la célula para su degradación lisosomal irreversible, logrando destruir receptores que los anticuerpos clásicos solo podían bloquear transitoriamente.
3. Click-to-Release (Plataforma CAPAC)
Quimioterapia de máxima potencia sin toxicidad sistémica. La Doxorrubicina es un quimioterápico muy eficaz pero con grave toxicidad cardíaca.
Se inyecta un biopolímero con Tetrazinas directamente en el tumor. Luego, se administra un profármaco inactivo de Doxorrubicina-TCO por sangre. Al tocar el tumor, la reacción bioortogonal libera el citotóxico activo con concentraciones 12 veces superiores sin dañar el corazón.
Módulo 4: Cuadro Comparativo de Plataformas Bioortogonales
Guía de Estudio| Plataforma | Reactivo A | Reactivo B | Cinética (k₂) | Fuerza Impulsora | Subproductos | Biocompatibilidad in vivo | Aplicación Clínica Principal |
|---|---|---|---|---|---|---|---|
| Ligación de Staudinger [1] | Azida (-N₃) | Triarilfosfina (éster orto) | 10⁻³ M⁻¹s⁻¹ | Afinidad P(III)-N y trampa electrofílica | Óxido de fosfina | Moderada (oxidación lenta) | Marcaje metabólico pionero en ratones vivos |
| CuAAC (Clic Catalizado) [3][4][7] | Azida (-N₃) | Alquino terminal | 10 - 100 M⁻¹s⁻¹ | Catálisis por Cu(I) | Ninguno | Baja (Tóxico) Genera ROS | Síntesis in vitro, conjugación ex vivo y ELISA |
| SPAAC (Clic sin Cobre) [5] | Azida (-N₃) | Ciclooctino tenso (DBCO/BCN) | 10⁻¹ - 1 M⁻¹s⁻¹ | Liberación de tensión angular (~18 kcal/mol) | Ninguno (atómica limpia) | Excelente | Terapias celulares CAR-T y anticuerpos conjugados |
| iEDDA (Tetrazina / TCO) [8] | 1,2,4,5-Tetrazina | trans-Cicloocteno (TCO) | 10⁴ - 10⁶ M⁻¹s⁻¹ | Demanda inversa + tensión del enlace trans | Gas Nitrógeno (N₂) inerte | Sobresaliente | Radioinmunoterapia PET predirigida y Click-to-Release |
| Click-to-Release (CAPAC) [9] | TCO-carbamato-Fármaco | Tetrazina polimérica | 10³ - 10⁵ M⁻¹s⁻¹ | Reordenamiento en cascada post-iEDDA | Dihidropiridazina + CO₂ + N₂ | Aprobada en Ensayos | Activación local de Doxorrubicina en tumores sólidos |
Módulo 5: Checkpoint Interactivo de Autoevaluación
Repaso RápidoHaz clic en cada pregunta para comprobar tu comprensión de los conceptos presentados por la Dra. Carolyn Bertozzi: